La coupe nette qui crée une réaction difficile
Un fragment d'ADN peut arriver à l'étape de ligation en semblant parfaitement préparé : les deux brins sont intacts, les extrémités sont propres et la séquence est exactement celle requise par le flux de travail.
Pourtant, la réaction peut encore échouer.
La raison est souvent cachée dans la géométrie de la terminaison de l'ADN. Un fragment à extrémité franche se termine précisément au niveau d'une paire de bases. Il n'y a pas de queue simple brin dépassant du duplex, pas d'appariement de bases temporaire, et aucun signal intégré indiquant à une extrémité d'ADN comment trouver son partenaire.
La coupe est nette.
La chimie, elle, ne l'est pas.
Cette distinction est importante dans la préparation de banques de diagnostic, le développement de contrôles positifs recombinants et la construction de vecteurs. Dans chaque application, la fiabilité d'un test en aval peut dépendre de la capacité d'une ligase à convertir une collision moléculaire à faible probabilité en une liaison phosphodiester stable.
Ce que signifie réellement l'ADN à extrémités franches
Une terminaison de duplex affleurante
Une extrémité franche est formée lorsque les deux brins d'un duplex d'ADN se terminent à la même position nucléotidique.
La structure résultante contient :
- Un fragment d'ADN double brin sans surplomb
- Un groupe phosphate 5' sur un brin
- Un groupe hydroxyle 3' sur le brin opposé
- Aucun nucléotide non apparié disponible pour un appariement temporaire
Structurellement, c'est simple. Fonctionnellement, c'est impitoyable.
Les extrémités cohésives (sticky ends), en revanche, contiennent des surplombs simple brin complémentaires. Ces surplombs peuvent se reconnaître et s'hybrider brièvement avant que l'enzyme ne complète la liaison. Les molécules d'ADN aident efficacement à se positionner elles-mêmes.
Les molécules à extrémités franches n'ont pas cette assistance.
L'absence de guidage moléculaire
Avec les extrémités cohésives, la complémentarité de séquence crée un certain degré de sélectivité. Avec les extrémités franches, presque toute terminaison franche compatible peut potentiellement se joindre à une autre.
Cette non-spécificité peut être utile. Elle peut aussi être dangereuse.
Dans une banque de séquençage, l'objectif peut être d'attacher des adaptateurs universels à une population diversifiée de fragments d'ADN. La jonction non spécifique est souhaitable car le flux de travail doit traiter de nombreuses séquences différentes de manière égale.
Dans la construction de plasmides, cependant, la non-spécificité peut créer des produits indésirables. Les inserts peuvent se joindre à eux-mêmes, les vecteurs peuvent se recirculariser et des répétitions en tandem peuvent se former.
La même propriété physique peut donc être un avantage dans un flux de travail et une source de bruit de fond dans un autre.
Pourquoi la ligation devient un problème cinétique
La ligation à extrémités franches n'est pas simplement une version moins pratique de la ligation à extrémités cohésives. Elle suit un chemin de réaction plus difficile.
Pour une ligation réussie, l'enzyme doit :
- Rencontrer deux extrémités d'ADN diffusant librement.
- Capturer les deux molécules avant qu'elles ne se séparent.
- Positionner les extrémités avec la géométrie correcte.
- Activer les terminaisons d'ADN.
- Catalyser la formation de la liaison phosphodiester.
- Libérer un produit joint sans introduire de variabilité de processus.
Les extrémités cohésives réduisent la charge sur plusieurs de ces étapes car les bases complémentaires aident à maintenir les fragments ensemble.
Les extrémités franches ne restent pas associées. L'enzyme doit fournir elle-même une grande partie de la fonction de positionnement. En conséquence, la réaction est plus lente et dépend davantage de la concentration, de la pureté et de l'activité intrinsèque de la ligase.
C'est pourquoi la ligase T4 à haute activité n'est pas seulement un choix de réactif pratique. C'est une réponse à la cinétique sous-jacente du substrat.
Le rôle de la ligase T4 à haute activité
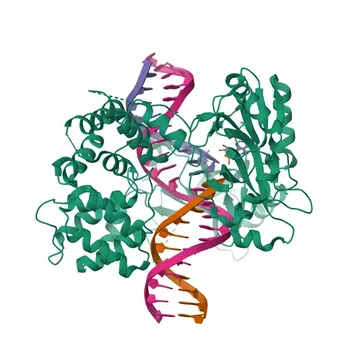
La ligase T4 catalyse la jonction de fragments d'ADN en formant une liaison phosphodiester covalente entre un phosphate 5' et un hydroxyle 3' voisin.
Dans les flux de travail à extrémités franches, l'enzyme doit travailler contre une rencontre faiblement favorable entre les terminaisons d'ADN. Une activité élevée améliore la probabilité que les collisions transitoires deviennent des événements de ligation productifs.
Cette amélioration a plusieurs conséquences pratiques :
- Une jonction plus complète dans une période d'incubation définie
- Une meilleure récupération des molécules de banque utilisables
- Un rendement plus élevé en clones recombinants
- Une moindre dépendance au dépannage répété
- Une plus grande cohérence entre les échantillons et les lots de production
L'activité seule ne suffit pas. Les flux de travail de diagnostic nécessitent également de la pureté et de la reproductibilité. Une enzyme avec une forte activité nominale mais des performances de lot incohérentes peut modifier l'efficacité de la ligation d'un cycle de fabrication à l'autre.
Pour les produits réglementés, cette variabilité n'est pas un inconvénient mineur. Elle peut devenir un problème de documentation, un risque de libération ou une menace directe pour la disponibilité du matériel de contrôle.
Les extrémités franches dans la préparation de banques NGS
La préparation de banques NGS révèle pourquoi la ligation à extrémités franches peut être à la fois techniquement difficile et stratégiquement précieuse.
L'ADN fragmenté est souvent traité par réparation des extrémités. L'objectif est de produire des extrémités avec une structure définie, incluant généralement des terminaisons franches et une phosphorylation 5'. Une fois les fragments standardisés, les adaptateurs de séquençage peuvent y être ligaturés.
À ce stade, chaque fragment perdu modifie la banque.
Attachement uniforme des adaptateurs
Une banque de diagnostic doit préserver autant que possible la complexité de l'échantillon original. Si certains fragments se ligaturent efficacement et d'autres non, la banque résultante peut ne plus représenter la population d'ADN originale.
Les conséquences peuvent inclure :
- Une couverture génomique inégale
- Un biais de séquence accru
- Une détection réduite des cibles à faible abondance
- Un risque plus élevé de perte allélique
- Une sensibilité plus faible près de la limite de détection du test
Une ligase à haute activité et haute pureté aide à augmenter le nombre de fragments recevant des adaptateurs. Elle n'élimine pas toutes les sources de biais, mais elle renforce l'une des étapes les plus importantes du flux de travail.
Le problème des dimères d'adaptateurs
La même chimie non spécifique qui aide à attacher les adaptateurs aux fragments d'échantillon peut également permettre aux adaptateurs de se ligaturer les uns aux autres.
Les dimères d'adaptateurs consomment la capacité de séquençage sans contribuer à des informations significatives sur l'échantillon. Ils peuvent également compliquer la purification et réduire la proportion de molécules de banque productives.
La solution n'est pas simplement d'ajouter plus d'enzyme. Un processus robuste doit équilibrer :
- La concentration en adaptateurs
- La quantité d'ADN en entrée
- Les rapports molaires
- Le temps de réaction
- L'activité enzymatique
- La stratégie de purification
- L'élimination des produits courts indésirables
La ligase est centrale, mais elle opère au sein d'un système. Une bonne performance de banque provient du contrôle de l'ensemble de l'environnement de réaction.
Construction de vecteurs à extrémités franches et contrôles positifs
Le défi apparaît différemment lors de la construction d'un contrôle positif recombinant pour un test de diagnostic basé sur la PCR.
Un fragment d'ADN synthétique peut contenir la séquence cible nécessaire pour représenter un pathogène, une mutation ou un analyte. Ce fragment doit être inséré dans un vecteur plasmidique afin de pouvoir être amplifié, quantifié, stabilisé et incorporé dans un processus de test contrôlé.
Une ligation échouée fait plus que gaspiller un tube de réaction. Elle peut retarder la vérification, prolonger les délais de développement et créer une pénurie de matériel de contrôle fiable.
Maximiser le rendement recombinant correct
Comme les extrémités franches ne fournissent pas d'appariement directionnel, la réaction nécessite souvent une optimisation délibérée.
Les considérations courantes incluent :
- L'utilisation d'un excès molaire d'insert par rapport au vecteur
- Le maintien d'une concentration d'ADN appropriée
- La prolongation de l'incubation si nécessaire
- L'utilisation d'une ligase T4 à haute activité
- La prévention de l'auto-ligation du vecteur
- Le criblage pour l'orientation correcte de l'insert et le nombre de copies
Un rapport molaire insert/vecteur supérieur à 3:1 est souvent un point de départ utile, bien que le rapport optimal dépende de la longueur du fragment, de la concentration du vecteur et de la stratégie de construction spécifique.
L'objectif n'est pas de forcer chaque molécule dans un produit. L'objectif est de déplacer la distribution de probabilité vers la construction recombinante souhaitée.
Contrôle des concatémères
Les inserts à extrémités franches peuvent se ligaturer les uns aux autres avant de rencontrer le vecteur. Le résultat peut être un concatémère : un arrangement en tandem de séquences d'insert répétées.
Les concatémères sont particulièrement problématiques lorsque le contrôle positif prévu nécessite un nombre de copies défini ou un arrangement de cible unique. Ils peuvent créer des résultats de criblage ambigus et compliquer la caractérisation en aval.
La déphosphorylation du vecteur peut réduire l'auto-ligation du vecteur en éliminant le phosphate 5' nécessaire à la formation de la liaison. Des agents de condensation tels que le PEG peuvent également augmenter la concentration effective des extrémités d'ADN et favoriser les rencontres intermoléculaires productives.
Ces interventions ne changent pas la chimie fondamentale. Elles changent les réactions les plus susceptibles de se produire.
Le compromis : La puissance ne supprime pas les contraintes
Une ligase à haute activité améliore la jonction à extrémités franches, mais elle ne transforme pas les extrémités franches en extrémités cohésives.
Les limitations inhérentes demeurent :
| Facteur de flux de travail | Défi de l'ADN à extrémités franches | Réponse pratique |
|---|---|---|
| Reconnaissance moléculaire | Aucun surplomb complémentaire ne guide l'appariement | Utiliser une ligase active et contrôler soigneusement la concentration d'ADN |
| Vitesse de réaction | Les collisions productives sont relativement peu fréquentes | Optimiser le temps d'incubation et la quantité d'enzyme |
| Complexité de la banque | Les fragments non ligaturés peuvent être perdus | Protéger la diversité des entrées par une ligation efficace des adaptateurs |
| Dimères d'adaptateurs | Les adaptateurs peuvent se joindre les uns aux autres | Optimiser les rapports molaires et la purification |
| Bruit de fond du vecteur | Le vecteur peut s'auto-ligaturer | Envisager la déphosphorylation du vecteur |
| Concatémères | Les inserts peuvent se joindre en tandem | Ajuster la concentration d'insert et cribler les produits recombinants |
| Cohérence de fabrication | La variation des lots peut altérer le rendement | Utiliser un approvisionnement en enzyme validé et cohérent par lot |
C'est là que le jugement technique compte. Un réactif ne peut pas compenser indéfiniment une conception de réaction déséquilibrée.
Choisir la bonne enzyme pour le résultat escompté
La meilleure décision concernant la ligase commence par l'exigence du produit, pas par la description du catalogue.
Pour la préparation de banques NGS
Priorisez :
- Une activité catalytique élevée
- Une pureté élevée
- Une faible contamination par les nucléases
- La compatibilité avec le tampon et le système d'adaptateurs
- Une performance cohérente entre les types d'échantillons
- Une récupération fiable des banques complexes
Ici, l'enzyme contribue directement à la représentation de l'échantillon original. De petites différences d'efficacité peuvent devenir significatives après amplification et séquençage.
Pour la construction de vecteurs
Priorisez :
- Une forte performance de ligation à extrémités franches
- La compatibilité avec le vecteur et la méthode de préparation de l'insert
- Une performance reproductible à la concentration d'ADN prévue
- Le support pour le criblage et l'optimisation
- Un protocole qui limite l'auto-ligation et la formation de concatémères
Le résultat souhaité n'est pas simplement "plus de ligation". Ce sont des molécules assemblées plus correctement.
Pour les contrôles positifs de diagnostic réglementés
Priorisez :
- Une cohérence rigoureuse entre les lots
- Des spécifications d'activité définies
- Une formulation stable et une performance de stockage
- La documentation technique
- La continuité de l'approvisionnement
- Le support technique pendant le développement et le transfert de méthode
Un contrôle positif devient une partie de la chaîne de preuve du système de diagnostic. Son processus de production mérite donc la même discipline que celle appliquée aux autres matières premières critiques.
De la sélection des réactifs à la fiabilité clinique
Le chemin d'un fragment d'ADN à un résultat de diagnostic contient de nombreuses petites transitions.
Un fragment est réparé. Un adaptateur est attaché. Une construction est criblée. Un contrôle est quantifié. Un kit est transféré en fabrication. Un laboratoire utilise finalement ce kit pour prendre une décision concernant un patient.
À chaque transition, la variabilité peut s'accumuler.
La ligase T4 à haute activité ne résout pas l'ensemble du flux de travail. Elle fait quelque chose de plus précis : elle rend une étape moléculaire difficile plus prévisible. Cette prévisibilité soutient une complexité de banque plus élevée, des rendements recombinants plus forts et une production de contrôle plus stable.
Pour les fabricants de produits de diagnostic, la question pratique est donc plus large que de savoir si une enzyme peut ligaturer l'ADN.
Les meilleures questions sont :
- Son activité peut-elle être reproduite d'un lot à l'autre ?
- Sa pureté a-t-elle été validée pour l'application prévue ?
- Le fournisseur comprend-il le flux de travail environnant ?
- Le support technique peut-il se poursuivre du développement initial jusqu'à la fabrication ?
- L'approvisionnement est-il suffisamment fiable pour un produit réglementé ?
Pourquoi un partenaire intégré en matières premières est important
Pour les laboratoires et les instituts de recherche, une ligase peut être un composant parmi d'autres.
Pour les fabricants de produits de diagnostic, elle fait partie d'une chaîne plus large qui comprend la qualification des matières premières, le développement de tests, le transfert de processus, la documentation, le dépannage et la mise à l'échelle.
CamelBio fournit aux fabricants de produits de diagnostic, aux laboratoires et aux instituts de recherche un accès unique aux matières premières IVD, aux services techniques et au conseil. Son soutien s'étend du concept à la clinique, aidant les équipes à évaluer les enzymes moléculaires dans le contexte du flux de travail de diagnostic complet.
Ce contexte est important car la solution la plus efficace est rarement le réactif le plus puissant pris isolément. C'est le réactif, le protocole, le profil de qualité et la stratégie d'approvisionnement qui fonctionnent ensemble.
Perspective finale
L'ADN à extrémités franches est trompeusement minimal. Sa géométrie affleurante supprime le guidage moléculaire qui rend la ligation à extrémités cohésives efficace.
Cette absence crée une barrière cinétique.
La ligase T4 à haute activité aide à surmonter cette barrière en capturant les rencontres transitoires d'ADN et en les convertissant en liaisons stables. Dans la préparation de banques NGS, cela favorise une large récupération des fragments et réduit les biais. Dans la construction de vecteurs, cela améliore la probabilité d'obtenir la molécule recombinante souhaitée tout en exigeant un contrôle minutieux des produits de fond.
La leçon d'ingénierie est simple : lorsqu'un système manque d'alignement naturel, la performance dépend de la qualité du mécanisme qui le fournit.
Pour des enzymes fiables, des conseils d'application et un support en matières premières de diagnostic tout au long du développement et de la fabrication, commencez par Contacter nos experts.
Produits associés
- Anticorps Monoclonal Lapin Anti-Ligase IV d'ADN pour WB, ELISA - P49917
- Anticorps polyclonal de lapin anti-DNA Ligase IV pour WB, IHC-P, ELISA - P49917
- Anticorps polyclonal de lapin anti-ADN Ligase III/LIG3 pour WB, IP, ELISA - P49916
- Anticorps monoclonal anti-ADN Ligase I pour WB, IHC-P, IF/ICC, ELISA - P18858
- Anticorps polyclonal de lapin anti-ADN Ligase III/LIG3 pour WB, IHC-P, IF/ICC, ELISA - P49916